Bases métaboliques des relations plantes-bioagresseurs
Bases métaboliques des relations plantes-bioagresseurs
Objectifs
Les relations métaboliques entre les plantes et leurs bioagresseurs (virus, bactéries, champignons, nématodes, insectes phytophages) reposent sur des interactions complexes entre le métabolisme primaire des partenaires, qui sous-tend la nutrition et la croissance et le métabolisme secondaire ou spécialisé, qui intervient dans les réponses de défense.
Les pathogènes et insectes phytophages se développent en utilisant les tissus de la plante comme puits de carbone et d'azote. Pour contrer les agressions, la plante déploie des barrières chimiques constituées de métabolites spécialisés, classés en quelques grandes familles chimiques telles que les flavonoïdes et les terpénoïdes. Ces composés peuvent être constitutifs (toujours présents) ou synthétisés après la reconnaissance de l'agresseur.
L’objectif de ces recherches est de mieux comprendre les mécanismes de ce face-à-face moléculaire qui détermine l'issue de l'interaction : la résistance de la plante ou le succès du bioagresseur. La majorité des recherches portent sur la vigne, mais elles concernent également d'autres plantes dans le cadre de collaboration.
Approches et moyens mis en œuvre
Pour mieux comprendre les déterminants des relations métaboliques entre les plantes et leurs bioagresseurs, l’équipe GMV combine des approches de métabolomique, de génomique structurale et fonctionnelle, ainsi que des approches de génétique en collaboration avec l’équipe de Génétique et Amélioration de la Vigne(GAV). Ces approches sont mises en œuvre grâce à la plateforme analytique et au serveur informatique de l’unité SVQV, gérés par l’équipe GMV.
1. Exploitation du métabolisme spécialisé de la vigne comme source de tolérance aux bioagresseurs
L’analyse du génome de la vigne a montré une remarquable expansion de différentes familles de gènes liées au métabolisme spécialisé (stilbènes synthases, terpène synthases, certains cytochromes P450), comparativement à d'autres plantes. La vigne semble donc posséder des capacités métaboliques remarquables chez les végétaux, ce qui en fait un modèle de choix pour l’étude du métabolisme spécialisé.
De nombreux composés chimiques synthétisés par la vigne permettent de lutter contre les stress biotiques et abiotiques. Parmi eux, les stilbènes sont des métabolites de stress majeurs, qui sont également connus pour leurs nombreuses propriétés pharmacologiques. La première étape de la biosynthèse des stilbènes est catalysée par la stilbène synthase (STS, Figure 1), pour former le resvératrol. L’analyse détaillée du génome de la vigne a permis d’identifier 48 gènes STS, dont 32 gènes potentiellement fonctionnels. La caractérisation fonctionnelle d’une sélection de gènes représentatifs de la diversité de la famille suggère que l’ensemble des 32 gènes STS code pour des protéines ayant réellement une activité stilbène synthase. La famille des STS de la vigne représente donc un exemple unique d’une famille de plus de 30 gènes codant pour des stilbène synthases impliquées dans la résistance à de multiples stress (Parage et al., 2012), ainsi que dans la biosynthèse des stilbènes qui s’accumulent constitutivement dans les parties ligneuses de la vigne. L’équipe GMV a également caractérisé la resvératrol O-méthyltransférase (ROMT) impliquée dans la synthèse du ptérostilbène. Ce dérivé méthylé du resvératrol est un composé particulièrement fongitoxique qui pourrait jouer un rôle important dans les défenses de la vigne contre les maladies fongiques (Schmidlin et al., 2008). Enfin, nos recherches ont abouti à la caractérisation de la diversité du métabolisme des stilbènes chez Vitis sylvestris, l’ancêtre sauvage de la vigne cultivée (Duan et al., 2015).
2. Développement d’approches métabolomiques innovantes pour l’étude du métabolisme végétal et des relations plante/pathogènes ou ravageurs
L’équipe GMV s’attache à développer des approches métabolomiques innovantes pour l’étude du métabolisme végétal et des relations plante/pathogènes ou ravageurs. Au-delà des approches métabolomiques classiques réalisées en routine sur la plateforme (profilage métabolique, analyses métabolomiques différentielles en mode ciblé et non ciblé, résolution de la structure et identification de molécules d’intérêt), nous avons développé des approches métabolomiques moins conventionnelles pour répondre à des besoins spécifiques, comme le phénotypage de la résistance aux bioagresseurs ou bien pour analyser des systèmes complexes tels que les relations plantes-ravageurs.
A. Développement d’approches métabolomiques pour le phénotypage de précision des relations vigne-bioagresseurs.
L’UMR SVQV mène depuis le début des années 2000 un programme de sélection des variétés de vignes résistantes qui a abouti à l’inscription de nouvelles variétés de vigne possédant des résistances polygéniques au mildiou et à l’oïdium, variétés dont la culture permet une réduction de 80% de l’usage des fongicides. La création variétale s’appuie sur une stratégie de recherche continuelle de nouvelles sources de résistance issues des vignes sauvages. Ces recherches nécessitent des méthodes de phénotypage performantes, permettant idéalement de caractériser précisément les mécanismes de résistances mis en jeux en présence de chaque gène. En effet, l’efficacité du pyramidage des gènes de résistances repose sur la complémentarité des effets des différents gènes, en évitant autant que possible les redondances.
Grâce à une approche de lipidomique non-ciblée par spectrométrie de masse (Figure 2A), nous avons identifié des biomarqueurs lipidiques spécifiques de l’agent du mildiou Plasmopara viticola (Figure 2B), dont la quantification permet un suivi dynamique de l'infection bien avant l'apparition des symptômes, aussi bien dans des variétés de vigne sensibles, partiellement résistantes ou résistantes. Cette méthode de quantification du développement de P. viticola à moyen débit (250 échantillons/jour) permet un phénotypage dynamique et extrêmement précis de la résistance au mildiou (Negrel et al., 2018).
Ces méthodes de phénotypage innovantes sont maintenant utilisées en routine par la plateforme de phénotypage pour la résistance au mildiou et à l’oïdium de l’UMR SVQV, en complément des méthodes de phénotypage traditionnelles. Ce phénotypage de haute précision est actuellement utilisé pour la caractérisation détaillée des gènes de résistance à Plasmopara viticola (Rpv) utilisés dans les programmes de sélection en cours, en particulier dans le cadre du projet ANR international FunDur(2023-2025)« Functional dissection of resistance mechanisms used in grapevine breeding programs for durable resistance to downy mildew ». Ces recherches ont permis de mettre en évidence des interactions le plus souvent positives, mais parfois négatives, entre gènes de résistances Rpv pyramidés chez les variétés de vignes résistantes au mildiou (Figure 3), ce qui souligne la nécessité de poursuivre l’études détaillée des mécanismes de résistance liés aux gènes Rpv pour assurer la durabilité des résistances (Possamai et al., 2026a) (Possamai et al., 2026b).
B. Développement d’approches métabolomiques multi-espèces pour l’étude de relations complexes plantes-ravageurs
Bases métaboliques des relations tripartites plante-virus-vecteur
De nombreux virus de plantes sont transmis par des vecteurs tels que les pucerons. Dans le cadre des recherches menées par l’équipe ViVe sur les mécanismes de manipulation des plantes et des vecteurs par les virus, l’équipe GMV développe des approches métabolomiques pour étudier les impacts des interactions sur le métabolisme des différents partenaires (Figure 4) :
Impact du virus sur la plante
Impact du virus sur le puceron
Impact du puceron sur la plante
Impact de la plante (virosée ou non) sur le puceron
Ces recherches ont permis de mettre en évidence différents mécanismes de manipulation des plantes et des vecteurs par les virus, tels que :
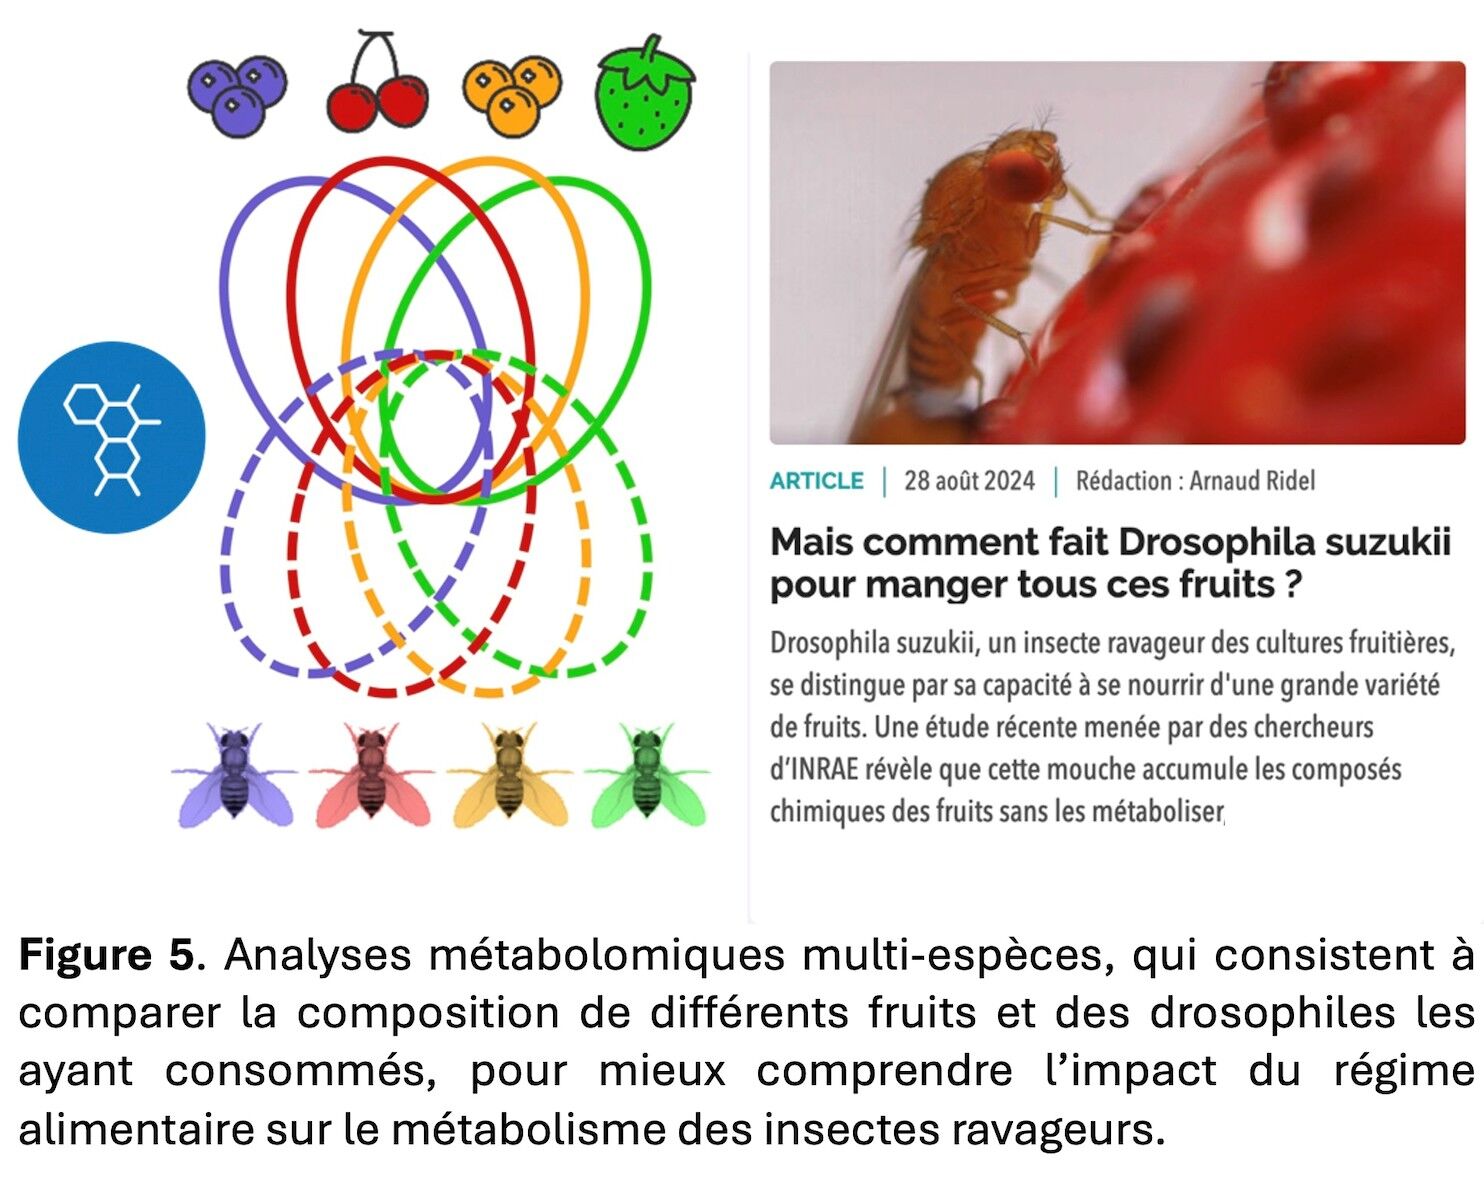
Mais comment fait Drosophila suzukii pour manger tous ces fruits ?
Drosophila suzukii est une mouche ravageuse qui menace de nombreuses cultures fruitières, telles que les cerises, les raisins, les fraises et les framboises. Cette espèce "généraliste" consomme une large gamme de fruits, dont certains peuvent contenir naturellement des composés toxiques. La question se pose donc de savoir si cet appétit diversifié provient d'une somme d'adaptations spécifiques à différents fruits, ou bien d'un comportement opportuniste sans adaptation particulière. En effet, la plupart des insectes phytophages sont des spécialistes, ce qui signifie qu’ils se nourrissent d’un nombre restreint d’espèces végétales. Au contraire, les insectes généralistes ont une large gamme d’hôte, mais on ne sait pas comment ils s’adaptent à une gamme plus large de compositions chimiques de leur nourriture. Cette question complexe pourrait s’énoncer de façon plus simple de la manière suivante : Mais comment fait Drosophila suzukii pour manger tous ces fruits ?
En collaboration avec des chercheurs du Centre de Biologie pour la Gestion des Populations (CBGP), nous avons apporté des éléments de réponse à cette question grâce au développement d’une approche originale de métabolomique multi-espèces, qui consiste à comparer la composition de différents fruits et des drosophiles les ayant consommés (Figure 5). Ces analyses indiquent que les mouches accumulent passivement de nombreux composés spécifiques des fruits, même toxiques, sans trace de métabolisation particulière. Il est donc probable que les insectes « généralistes » soient tolérants plutôt qu'adaptés à différentes plantes. Ces recherches permettent de mieux comprendre les mécanismes qui façonnent les relations plante-insectes et ouvrent la voie à l’optimisation des outils de gestion de ce ravageur de cultures, par le suivi du menu des populations naturelles de Drosophila suzukii grâce aux composés des fruits qu’elles contiennent. Ces travaux sont parus dans la revue eLife (Olazcuaga, et al., 2023), publication retenue comme fait marquant 2023 par le Département SPE.
Ce site utilise des cookies afin de vous proposer des vidéos, des boutons de partage, des remontées de contenus de plateformes sociales et des contenus animés et interactifs.
En savoir plus
A propos des cookies
Qu’est-ce qu’un « cookie » ?
Un "cookie" est une suite d'informations, généralement de petite taille et identifié par un nom, qui peut être transmis à votre navigateur par un site web sur lequel vous vous connectez. Votre navigateur web le conservera pendant une certaine durée, et le renverra au serveur web chaque fois que vous vous y re-connecterez.
Différents types de cookies sont déposés sur les sites :
Cookies strictement nécessaires au bon fonctionnement du site
Cookies déposés par des sites tiers pour améliorer l’interactivité du site, pour collecter des statistiques
Les différents types de cookies déposés sur ce site
Cookies strictement nécessaires au site pour fonctionner
Ces cookies permettent aux services principaux du site de fonctionner de manière optimale. Vous pouvez techniquement les bloquer en utilisant les paramètres de votre navigateur mais votre expérience sur le site risque d’être dégradée.
Par ailleurs, vous avez la possibilité de vous opposer à l’utilisation des traceurs de mesure d’audience strictement nécessaires au fonctionnement et aux opérations d’administration courante du site web dans la fenêtre de gestion des cookies accessible via le lien situé dans le pied de page du site.
Cookies techniques
Nom du cookie
Finalité
Durée de conservation
Cookies de sessions CAS et PHP
Identifiants de connexion, sécurisation de session
Session
Tarteaucitron
Sauvegarde vos choix en matière de consentement des cookies
12 mois
Cookies de mesure d’audience (AT Internet)
Nom du cookie
Finalité
Durée de conservation
atid
Tracer le parcours du visiteur afin d’établir les statistiques de visites.
13 mois
atuserid
Stocker l'ID anonyme du visiteur qui se lance dès la première visite du site
13 mois
atidvisitor
Recenser les numsites (identifiants unique d'un site) vus par le visiteur et stockage des identifiants du visiteur.
13 mois
À propos de l’outil de mesure d’audience AT Internet :
L’outil de mesure d’audience Analytics d’AT Internet est déployé sur ce site afin d’obtenir des informations sur la navigation des visiteurs et d’en améliorer l’usage.
L‘autorité française de protection des données (CNIL) a accordé une exemption au cookie Web Analytics d’AT Internet. Cet outil est ainsi dispensé du recueil du consentement de l’internaute en ce qui concerne le dépôt des cookies analytics. Cependant vous pouvez refuser le dépôt de ces cookies via le panneau de gestion des cookies.
À savoir :
Les données collectées ne sont pas recoupées avec d’autres traitements
Le cookie déposé sert uniquement à la production de statistiques anonymes
Le cookie ne permet pas de suivre la navigation de l’internaute sur d’autres sites.
Cookies tiers destinés à améliorer l’interactivité du site
Ce site s’appuie sur certains services fournis par des tiers qui permettent :
de proposer des contenus interactifs ;
d’améliorer la convivialité et de faciliter le partage de contenu sur les réseaux sociaux ;
de visionner directement sur notre site des vidéos et présentations animées ;
de protéger les entrées des formulaires contre les robots ;
de surveiller les performances du site.
Ces tiers collecteront et utiliseront vos données de navigation pour des finalités qui leur sont propres.
Accepter ou refuser les cookies : comment faire ?
Lorsque vous débutez votre navigation sur un site eZpublish, l’apparition du bandeau « cookies » vous permet d’accepter ou de refuser tous les cookies que nous utilisons. Ce bandeau s’affichera tant que vous n’aurez pas effectué de choix même si vous naviguez sur une autre page du site.
Vous pouvez modifier vos choix à tout moment en cliquant sur le lien « Gestion des cookies ».
Vous pouvez gérer ces cookies au niveau de votre navigateur. Voici les procédures à suivre :
Pour obtenir plus d’informations concernant les cookies que nous utilisons, vous pouvez vous adresser au Déléguée Informatique et Libertés de INRAE par email à cil-dpo@inrae.fr ou par courrier à :
INRAE 24, chemin de Borde Rouge –Auzeville – CS52627 31326 Castanet Tolosan cedex - France